En 2022, al menos 10 personas en el mundo con síndrome de Brunner han sido descritas en investigaciones médicas.
Efecto de la portación de alelos de riesgo de MAO-A y DRD4 sobre mediciones de agresión
Effect of Risk Alleles MAO-A and DRD4 on Aggression Measures
César Romero, Feggy Ostrosky1 & Beatriz Camarena2
Universidad Nacional Autónoma de México.
2Instituto Nacional de Psiquiatría "Ramón de la Fuente Muñiz".
1 Correspondencia:
Facultad de Psicología,
Universidad Nacional Autónoma de México,
Rivera de Cupia 11071, Lomas de Reforma,
México D.F. 11900. Fax: (+525) 5251-76-56.
Correo: feggy@servidor.unam.mx
Original recibido / Original received: 16/12/2011
Aceptado / Accepted : 31/03/2012
Resumen
Entre
los diversos factores asociados con la predisposición a la conducta
violenta se encuentra la portación de alelos de riesgo. Para investigar
el efecto de dos alelos de riesgo (baja actividad de MAO-A y 7
repeticiones DRD4) sobre mediciones de agresión, se evaluaron mediante
escalas psicológicas a 60 hombres sanos. Los resultados indicaron que
tanto el efecto principal de cada uno de los alelos de riesgo, como su
interacción impactan sobre mediciones de hostilidad, enojo,
impulsividad, empatía y rasgos antisociales de psicopatía. Se concluye
que es necesario investigar el efecto de estos alelos sobre la
estructura y función cerebrales, además estos alelos aparentemente
confieren riesgo para el desarrollo de conductas violentas.
Palabras clave: Agresión, DRD4, Epistasis, Impulsividad, MAO-A, Violencia.
Actualmente
ha habido avances importantes en el campo de la genética de la agresión
y la violencia, se sabe que la contribución genética a la conducta es
importante, se ha propuesto que los factores genéticos explican entre el
40% y el 50% de la varianza de los rasgos asociados al trastorno
antisocial incluyendo la violencia (Rhee & Waldman, 2002).
Epidemiológicamente
se han asociado polimorfismos de riesgo para el desarrollo de conductas
violentas en el gen de la monoamin oxidasa-A (MAO-A) y en el gen de los
receptores de dopamina D4 (DRD4).
La
MAO es una enzima que cataliza monoaminas en el cerebro y en tejidos
periféricos. Se conocen dos tipos de MAO que se han denominado MAO-A y
MAO-B. La forma A tiene afinidad por la serotonina (5HT), norepinefrina
(NE), dopamina (DA) y la clorgilina, la forma B tiene mayor afinidad por
la feniletilamina, benzilamina y el deprenil, ambas formas están
localizadas en el cerebro en la parte externa de la membrana de la
mitocondria. Los genes de ambas formas de MAO se cree que provienen del
mismo gen ancestral, ambos están localizados en el cromosoma X (Xp11.23)
y cuentan con 15 exones con idéntica organización intrón-exón. En
humanos y roedores MAO-A está presente antes que MAO-B, los niveles de
MAO-A son mayores en la etapa prenatal y posnatal que en la adultez,
mientras que los niveles de MAO-B incrementan con la edad, este
incremento de MAO-B se debe a la proliferación de células gliales donde
se localiza predominantemente (Shih, Chen & Ridd, 1999). La
preferencia que tiene MAO-A por 5HT y NE se descubrió en ratones
knockout para MAO-A, y no para MAO-B, los cuales presentaron mayores
niveles de serotonina y norepinefrina en el cerebro comparados con
ratones control, además presentaron mayores niveles de conducta agresiva
(Cases et al., 1995).
En
humanos se ha descrito una mutación en el gen de la MAO-A
(Xp11.23-11.4) que introduce un codón de terminación e identificado en
una familia con predisposición a la violencia de tipo impulsivo
(Brunner, Nelen, Breakefield, Ropers & van Oost, 1993). Dicha
mutación es rara, sin embargo se ha localizado otro polimorfismo
funcional del tipo VNTR o número variable de repeticiones en tándem,
localizado en la región promotora del gen de la MAO-A (MAO-A-uVNTR) y
caracterizado por una repetición de la secuencia de 30 pares de bases
que impacta en la eficiencia de la transcripción del gen in Vitro; la
actividad transcripcional mostró ser mayor en los portadores de los
alelos de 3.5 o 4 repeticiones (alelos MAOA-H) y menor en los portadores
de 2, 3 o 5 repeticiones (alelos MAOA-L) (Sabol, Hu & Hamer, 1998).
Los
estudios llevados a cabo en humanos acerca del efecto de la variación
genética de MAO-A sobre mediciones de agresión impulsiva han arrojado
resultados contradictorios. Los resultados que destacan son los que se
refieren al papel moderador del genotipo MAO-A en la relación abuso
infantil-violencia. Caspi et al. (2002) reportaron una interacción
significativa genXambiente que mostró que los sujetos que recibieron
maltrato infantil y eran portadores de la variante MAOA-L tenían una
mayor probabilidad de desarrollar conducta antisocial en la edad adulta,
siendo más fuerte el efecto en los hombres. En este mismo sentido, en
otro estudio se reportó una interacción significativa
géneroXgenotipoXmaltrato sobre el puntaje de agresión física, esto es,
los hombres portadores del alelo de baja actividad de MAO-A con eventos
traumáticos en la niñez presentaron mayores puntajes de agresión física
(Frazzetto et al., 2007). Por otro lado, en un estudio cuyo objetivo fue
replicar lo propuesto por Caspi y colaboradores, se reportó que el
maltrato en la adolescencia fue un factor de riesgo para el desarrollo
de problemas conductuales como rasgos antisociales y violencia, sin
embargo, se obsevó que las variantes de la MAO-A no mostraron asociación
ni interacción con el maltrato como un factor de riesgo para el
desarrollo de conducta antisocial (Huizinga et al., 2006). En otro
estudio se encontró que el genotipo MAO-A fue capaz de distinguir los
hombres, tanto la pertenencia a pandillas como el uso de armas. El
análisis de frecuencias de alelos reveló que entre los hombres miembros
de pandillas y los usuarios de armas había mayor número de portadores
del alelo de baja actividad de MAO-A (Beaver, DeLisi, Vaughn &
Barnes, 2010).
En
resumen, estos estudios demuestran consistentemente que factores como
el género masculino y ser portador del alelo MAOA-L, en interacción con
maltrato infantil, incrementan la susceptibilidad para el desarrollo de
rasgos antisociales y de agresión física y violencia. Lo anterior va en
la misma línea con lo reportado en un metanálisis en el cual se concluyó
que la variación del genotipo MAO-A modera la relación entre maltrato
en la niñez y la presencia de problemas mentales, p. e. trastorno
antisocial, esto es, los hombres MAOA-L son los más vulnerables a los
efectos de los eventos estresantes y son más proclives al desarrollo de
rasgos antisociales en la adultez (Kim-Cohen et al., 2006).
La
dopamina es un neurotransmisor del grupo de las monoaminas que regula
funciones cerebrales como la actividad locomotora, la recompensa y la
cognición. En algunos estudios se ha señalado un papel del sistema
dopaminérgico en algunos rasgos característicos de la conducta agresiva
como el enojo y la impulsividad. Se ha sugerido que la dopamina está
relacionada al enojo y la delincuencia (en las formas agresivas y no
agresivas), el metilfenidato reduce los ataques de ira, conductas
antisociales como los robos, y episodios de agresión. El aripiprazol que
es un agonista de la dopamina se ha relacionado con la reducción del
enojo en el trastorno limítrofe de la personalidad (Dmitrieva, Chen,
Greenberger, Ogunseitan & Ding, 2010).
El
receptor de dopamina D4 (DRD4) es una proteína G acoplada al receptor
que se expresa principalmente en la corteza prefrontal, región que
modula funciones como la orientación de la conducta, la categorización y
el filtro de claves ambientales (Avale et al., 2004); además, se ha
asociado a la reactividad del estriado ventral en relación al sistema de
la recompensa (Dmitrieva et al., 2010).
Se
ha identificado un polimorfismo VNTR en el gen DRD4, localizado en el
tercer exón y caracterizado por una secuencia de 48 pares de bases que
se pueden repetir de 2 a 11 veces. Se ha sugerido que los alelos cortos,
constituídos por la variantes de 2 a 5 repeticiones presenta una
función diferencial comparado con los alelos largos, que incluye a las
variantes de 6 a 11 repeticiones (Lusher, Chandler & Ball, 2004;
Vieyra, Moraga, Henríquez, Aboitiz & Rothhammer, 2003).
En
particular, las diferencias funcionales del alelo de 7 repeticiones del
DRD4 consisten en la reducción en la inhibición postsináptica, lo cual
resulta en una mayor reactividad del estriado ventral en relación a la
recompensa. Algunos estudios han demostrado que existe una relación
entre el alelo de 7 repeticiones del DRD4 y trastornos
neuropsiquiátricos como el TDAH, el rasgo de búsqueda de la novedad y el
abuso de sustancias (Vieyra et al., 2003), con delincuencia en la
adolescencia, temperamento explosivo y búsqueda del peligro en hombres
comparados con mujeres (Dmitrieva et al., 2010), y con agresión física
en pacientes con esquizofrenia (Fresán et al., 2007).
Un
método interesante en el estudio de la contribución genética a la
conducta, es el análisis del efecto de las interacciones entre distintos
genes-epistasis- sobre una característica en particular, este modelo
pretende probar el efecto de un conjunto de genes en el desarrollo de un
fenotipo. A la fecha no se han reportado investigaciones sobre
epistasis y conducta violenta, así como el efecto de estas interacciones
sobre constructos asociados a la conducta violenta como la hostilidad,
impulsividad, reactividad interpersonal y rasgos psicopáticos.
Se
ha propuesto que el incremento en la impulsividad se relaciona con
conductas agresivas, sin embargo, el incremento en niveles de
hostilidad, enojo, la presencia de rasgos psicopáticos, sobre todo las
tendencias antisociales, y la falta de empatía se consideran factores de
riesgo para la violencia (Hare & Neumman, 2008; Kennealy, Skeem
& Walters, 2010;Lovett & Sheffield, 2007; Oquendo et al., 2001;
Romero & Ostrosky, 2010;Suter et al., 2002; Yang et al., 2010;).
El
objetivo del presente estudio fue investigar la presencia de epistasis
entre variantes genéticas de la MAO-A y DRD4 sobre mediciones de
agresión, hostilidad, impulsividad, reactividad interpersonal, rasgos de
psicopatía y enojo en una población sana.
Método
Participantes
Participaron
60 hombres adultos sanos, con edades entre 21 y 59 años (M=29.8,
DE=7.8), con una escolaridad entre 12 y 18 años (M=15.4, DE=1.7).
Los
participantes fueron reclutados de diversos lugares de la Cd. de
México, firmaron un consentimiento informado y fueron entrevistados para
descartar antecedentes psiquiátricos, neurológicos y de abuso de
sustancias, posteriormente se aplicaron los cuestionarios y se
obtuvieron las muestras bucales para obtener el ADN. Todas las
evaluaciones se llevaron a cabo en la Facultad de Psicología de la
Universidad Nacional Autónoma de México. Se les mencionó que todos los
datos eran confidenciales y serían utilizados con fines de
investigación.
Extracción de ADN y genotipificación
A
todos los participantes se les tomó una muestra de células bucales
utilizando el Kit Gentra Puregen Buccal Cell (Qiagen), para la obtención
del ADN. El análisis del polimorfismo MAO-A-uVNTR fue realizado por el
método de reacción en cadena de la polimerasa (PCR). Las secuencias de
los oligonucleótidos utilizados en este trabajo fueron, orientación
sense: 5'-ACA GCC TGA CCG TGG AGA AG-3', orientación antisense: 5'-GAA
CGG ACG ACG CTC CAT TCG GA-3'. La reacción de PCR se realizó en un
volumen final de 12.5 µl conteniendo 1.5 mM de MgCl2, 200 µM de cada
oligonucleótido, 0.2 µM de dNTPs (dATP, dCTP, dGTP, dTTP), 0.25 U de Go
Taq Flexi de promega y 50 ng de ADN genómico. Después de 4 min. de
desnaturalización a 95 °C, se realizaron 35 ciclos con las siguientes
condiciones: 1 min. a 95°C, 1 min. a 62°C y 1 min. a 72°C. Se finalizó
con un paso de 4 min. a 72°C. . Los productos de PCR fueron analizados
mediante electroforesis en geles de agarosa/Metaphor al 2.5% y
visualizados con luz UV después de teñirlos con bromuro de etidio.
El
análisis del polimorfismo DRD4 fue realizado por el método PCR. Las
secuencias de los oligonucleótidos utilizados en este trabajo fueron,
D4-3 (5'-GCG ACT ACG TGG TCT ACT CG-3') y D4-42 (5'AGG ACC CTC ATG GCC
TTG-3'). La reacción de PCR se realizó en un volumen final de 12.5 µl
conteniendo 2 mM de MgCl2, 200 µM de cada oligonucleótido, 0.2 µM de
dNTPs (dATP, dCTP, dTTP) con 0.1 µM de dGTP y 0.1 µM de 7-deaza-GTP, 10%
de DMSO, 0.5 U de DNA polimerasa y 120 ng de ADN genómico. Después de 3
min. de desnaturalización a 95°C, se realizaron 40 ciclos con las
siguientes condiciones: 30 seg. min. a 95°C, 30 seg. a 54°C y 1 min. a
72°C. Se finalizó con un paso de 4 min. a 72°C. Los productos de PCR
fueron analizados mediante electroforesis en geles de agarosa/ Metaphor
al 2.2% y visualizados con luz UV después de teñirlos con bromuro de
etidio. El tamaño de los alelos se determino al comparar las bandas con
una escalera de ADN de 50 pb.
Los
sujetos fueron divididos de acuerdo a los genotipos de MAO-A (alta
actividad vs. baja actividad) y DRD4 (no alelo 7 -no7R- vs. portadores
de al menos un alelo de 7 repeticiones -7R-).
Instrumentos
Cuestionario
de agresión reactiva y proactiva RPQ (Raine et al., 2006) en su versión
en español (Andreu, Peña & Ramírez, 2009). Es un instrumento
utilizado para medir la agresión reactiva y proactiva está compuesto por
23 ítems distribuidos en 2 factores, agresión reactiva y agresión
proactiva, con una consistencia interna global de .91. Los ítems son
puntuados en una escala de frecuencia (0=nunca, 1=a veces, y 2=a
menudo).
Inventario
de hostilidad de Buss-Durkee BDHI (Buss & Durkee, 1957), en su
versión en español (Oquendo et al., 2001). Es un instrumento formado por
75 ítems Verdadero/Falso, está compuesto por una puntuación total y 8
subescalas: violencia, hostilidad indirecta, irritabilidad, negativismo,
resentimiento, recelos, hostilidad verbal y culpabilidad. Tiene una
consistencia interna global de .86.
Escala
de impulsividad de Plutchik IP (Plutchik & Van Pragg, 1989) en su
versión en español (Páez et al., 1996). Mide la tendencia para
involucrarse en conductas impulsivas, consta de 15 ítems contestados en
una escala de frecuencia de 3 puntos. Se compone de 4 subescalas:
autocontrol, planeación de las acciones, conductas fisiológicas y
actuación espontánea. Tiene una consistencia interna global de .66.
Escala
de enojo de Novaco (Novaco, 1994). Mide la inclinación general a tener
reacciones de enojo, consiste de 2 partes. La parte A consiste de 48
ítems agrupados en 3 subescalas: cognitiva, activación y conductual. La
parte B consiste en 25 ítems que describen situaciones que podrían
inducir enojo, se agrupa en 5 subescalas de acuerdo a la naturaleza de
la situación que desencadena el enojo: trato irrespetuoso, injusticia,
frustración, rasgos molestos de los demás e irritación. Tiene una
consistencia internal global de .97.
Índice
de reactividad interpersonal IRI (Davis, 1980) en su versión en español
(Pérez, de Paúl, Etxeberría, Montes & Torres, 2003). Es un
instrumento que evalúa la empatía disposicional. Se compone de 28 ítems
distribuidos en 4 factores: perspective taking, fantasy, empathic
concerní y personal distress. La consistencia interna de los factores
oscila entre .70 y .78.
Escala
de psicopatía de Levenson EPL (Levenson, Kiehl & Fitzpatrick,
1995). Mide los rasgos de psicopatía en población no institucionalizada,
consta de 26 ítems distribuidos en 2 factores: psicopatía primaria y
psicopatía secundaria con una consistencia interna de .82 y .63
respectivamente.
Análisis estadístico
Para
investigar los efectos principales y las interacciones se generaron
modelos de ANOVA factorial mediante el modelo lineal general, se
incluyeron los puntajes de las escalas como variables dependientes y los
genotipos MAO-A (alta vs. baja) y DRD4 (no7R vs. 7R) como factores
entre sujetos, se corrigió el nivel de significancia mediante el método
de Bonferroni para comparaciones múltiples. Los datos se analizaron
usando el paquete estadístico SPSS 17.
Resultados
Distribución de alelos y genotipos
Los
alelos de MAO-A se distribuyeron en 68.3% de alta actividad y 31.7% de
baja actividad, mientras que los genotipos de DRD4 se distribuyeron en
2/3 (1.7%), 2/4 (3.3%), 2/7 (1.7%), 3/4 (1.7%), 3/7 (1.7%), 4/4 (40%),
4/6 (3.3%), 4/7 (33.3%), 4/8 (1.7%), 6/6 (3.3%), 6/7 (1.7%), 7/7 (6.7%).
En el análisis del polimorfismo del gen DRD4 se comparó entre los no7R
(2/3, 2/4, 3/4, 4/4, 4/6, 4/8 y 6/6; 55%) contra los 7R (2/7, 3/7, 4/7,
6/7 y 7/7; 52.9%).
Efecto principal de MAO-A
La
variación genética de MAO-A tuvo efecto sobre mediciones de hostilidad,
impulsividad, empatía y enojo, en el que los portadores del alelo de
baja actividad presentaron un incremento en el puntaje de la subescala
de resentimiento del BDHI respecto a los portadores del alelo de alta
actividad F (1, 53)=5.19, p=.027; en el puntaje total de la escala de
impulsividad de Plutchik F (1, 54)=4.29, p=.043 y en la subescala de
actuación espontánea de la misma escala F (1, 54)=4.71, p=.035. En la
subescala de angustia personal del IRI F (1, 49)=5.59, p=.022 y por
último en el puntaje de duración del enojo del factor activación de la
parte A del NAS F (1, 55)=4.22, p=.045.
Efecto principal de DRD4
Los
sujetos portadores del alelo de 7 repeticiones tuvieron incrementos en
los puntajes de mediciones de hostilidad, impulsividad, rasgos
antisociales de la psicopatía y enojo. Específicamente estos incrementos
se presentaron en la subescala de hostilidad verbal del BDHI F(1,
52)=4.85, p=.032, en la subescala de planeación de la escala de
impulsividad de Plutchik F (1, 54)=4.22, p=.045, en los rasgos
antisociales de psicopatía de la escala de Levenson F(1, 51)=6.22,
p=.016, en el puntaje de expresión indirecta del enojo del factor
conductual de la parte A del NAS F (1, 55)=8.98, p=.004 y en el puntaje
de frustración de la parte B del NAS F (1, 55)=4.69, p=.035.
El
alelo de 7 repeticiones se expresó como un decremento en el puntaje de
la subescala de preocupación empática del IRI F (1, 49)=5.76, p=.02.
Epistasis
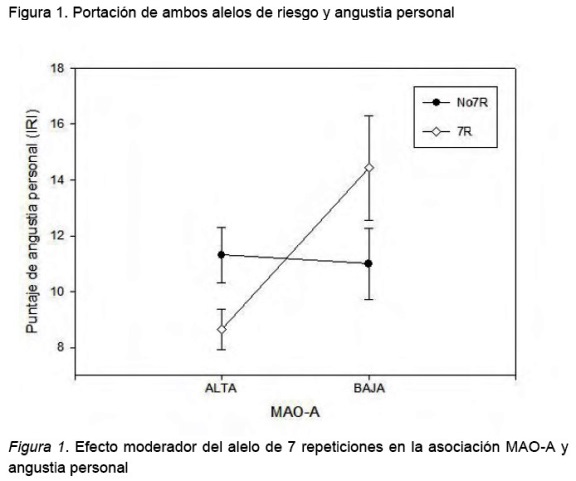
Se
encontró una interacción significativa entre ambos genes en el puntaje
de angustia personal del IRI F (1, 49)=6.94, p=.011, esta interacción se
expresó como un incremento significativo en este puntaje en los sujetos
portadores de ambos alelos de riesgo el de 7 repeticiones de DRD4 y el
de baja actividad de MAO-A (tabla 1 y figura 1).

Discusión
Este
estudio fue diseñado para investigar los efectos principales y las
posibles interacciones entre 2 genes considerados de riesgo para el
desarrollo de conductas violentas y de rasgos asociados a estas como
hostilidad, impulsividad, empatía, psicopatía y enojo, el alelo de baja
actividad de MAO-A y el alelo de 7 repeticiones del DRD4.
La
variante de baja actividad transcripcional del gen de MAO-A se asocia a
un incremento de rasgos hostiles, en particular el resentimiento, se
considera que altos niveles de hostilidad preceden al desarrollo de
conductas agresivas impulsivas (Oquendo et al., 2001), el resentimiento
medido mediante el BDHI se refiere a la expresión de celos y odio hacia
los demás, lo cual puede indicar que estos sujetos tienden a sentir
estos afectos negativos. Esta variante de igual forma impactó sobre las
mediciones de impulsividad, particularmente sobre la conducta reflexiva y
descontrolada (Páez et al., 1996), Beaver et al. (2010) reportaron que
los hombres con baja actividad de MAO-A presentan conductas antisociales
con un componente impulsivo importante como las agresiones con armas.
La baja actividad de MAO-A también tuvo un efecto sobre la duración del
enojo fisiológicamente hablando, esta hiperactivación fisiológica que de
acuerdo a nuestros resultados presentaron los sujetos con baja
actividad de MAO-A se asocia a la interpretación cognitiva de estímulos
ambiguos que subjetivamente se etiquetan como estímulos que provocan
enojo, a pesar de que el enojo no necesariamente resulta en conductas
antisociales, se ha identificado que la intervención enfocada al manejo
del enojo resulta en una disminución de episodios violentos (Suter et
al., 2002).
Otro
de los resultados indica que la baja actividad de MAO-A se expresó como
un incremento en el puntaje de angustia personal del índice de
reactividad interpersonal, esta subescala mide la tendencia de un sujeto
a experimentar sentimientos de incomodidad al ser testigo de
experiencias negativas en otras personas tales como situaciones
emocionalmente tensas o estresantes como el rechazo social (Pérez et
al., 2003), este resultado concuerda con los hallazgos más consistentes
acerca de la vulnerabilidad que presentan los portadores del alelo de
baja actividad (MAOA-L) que se expresa como una hipersensibilidad ante
eventos adversos como el maltrato infantil que, de acuerdo a estos
estudios, los pone más en riesgo de cometer conductas violentas de tipo
impulsivo a manera de defensa, sin embargo, estas conductas son
reacciones exageradas (Caspi et al., 2002; Frazzetto et al., 2007;
Kim-Cohen et al., 2006).
Debido
a que la MAO-A tiene un efecto en el cerebro resulta interesante tomar
una perspectiva neurobiológica, en este sentido, la hiper-reactividad
ante situaciones emocionalmente adversas se ha descrito en los
portadores del alelo de baja actividad. En un estudio de resonancia
magnética estructural (MRI) y funcional (fMRI) al realizar una tarea de
activación emocional (caras de enojo y miedo) los sujetos con baja
actividad de MAO-A presentaron una actividad incrementada en la amígdala
y un decremento en el subgenual, supragenual -estas estructuras
participan en la interpretación de situaciones emocionales negativas-,
corteza cingulada ventral, corteza orbital lateral izquierda y corteza
insular izquierda, además en una tarea de memoria emocional
(codificación y evocación de información aversiva) estos sujetos
mostraron mayor actividad de la amígdala izquierda y la formación
hipocampal en la evocación del material por lo tanto se considera que un
sistema compuesto por la corteza prefrontal (orbital), cíngulo,
amígdala e hipocampo participa en la regulación emocional que sugiere
las bases de los mecanismos neurales de la tendencia genética a la
violencia impulsiva (Meyer-Lindenberg et al., 2006).
Se
ha hipotetizado que el genotipo de baja actividad de MAO-A confiere
hipersensibilidad al rechazo social lo cual podría resultar en una
predisposición genética al desarrollo de rasgos agresivos. En un estudio
de fMRI los hombres MAOA-L mostraron mayor nivel de agresión y de
hipersensibilidad interpersonal así como un incremento en la actividad
de la corteza cingulada anterior ante una condición de exclusión social,
lo cual sugiere que la MAO-A y la agresión se relacionan mediante la
hipersensibilidad socioemocional (Eisenberger, Way, Taylor, Welch &
Liebermann, 2007), además se considera que la sensibilidad emocional es
fundamental para la interacción social (Spinella, 2005).
El
alelo de 7 repeticiones se asoció con mayores puntajes de hostilidad
verbal, falta de planeación, psicopatía secundaria, expresión indirecta
del enojo, mayor disposición a la frustración; y con un menor puntaje de
preocupación empática. Los resultados del incremento en el puntaje de
dichas mediciones concuerdan con lo propuesto anteriormente acerca del
papel de la dopamina en la regulación de conductas antisociales
(Dmitrieva et al., 2010).
Los
estudios cognitivos y de neuroimagen han demostrado que el alelo de 7
repeticiones se asocia con un pobre desempeño en tareas de inhibición
conductual (Langley et al., 2004), con un efecto sobre el volumen de la
corteza prefrontal la cual participa en el control inhibitorio (Durston
et al., 2005), y con una mayor reactividad del estriado ventral que se
expresa en un fenotipo impulsivo (Forbes et al., 2009) nuestros
resultados evidencian un incremento en los niveles de impulsividad, lo
cual sugiere que aún en población sana este alelo produce un fenotipo
impulsivo lo cual se ha reportado previamente en sujetos con TDAH y con
abuso de sustancias (Vieyra et al., 2003). El incremento en la tendencia
a la frustración, impulsividad y hostilidad presentado por los sujetos
7R sugiere que este alelo confiere riesgo al desarrollo de conductas
agresivas impulsivas, estas conductas ocurren en presencia de
provocaciones o la percepción subjetiva de amenazas, por definición son
conductas no planeadas y defensivas en naturaleza y se asocian a enojo y
frustración. Este tipo de agresión tiene su origen en las teorías de
"frustración-agresión" y se define operacionalmente como la "agresión en
respuesta a la provocación" (Nouvion, Cherek, Lane, Tcheremissine &
Lieving, 2007). En este sentido se ha propuesto que los rasgos
antisociales de la psicopatía predicen tanto la conducta violenta como
la comisión de crímenes violentos (Kennealy et al., 2010; Romero &
Ostrosky, 2010; Yang et al., 2010), los sujetos 7R presentaron mayores
niveles de psicopatía secundaria que se caracteriza por altos niveles de
impulsividad, lo cual los pone en riesgo de desarrollar conductas
violentas.
En
cuanto al decremento en el puntaje de preocupación empática que se
refiere a la tendencia a experimentar sentimientos de compasión y
preocupación hacia otros, se han reportado disfunciones prefrontales que
correlacionan negativamente con mediciones de empatía en sujetos sanos
(Spinella, 2005), lo anterior aunado al fenotipo impulsivo de los
portadores del alelo de 7 repeticiones sugiere que este alelo confiere
riesgo al desarrollo de conductas agresivo-impulsivas.
Un
resultado interesante fue el de la interacción significativa de ambos
genes sobre el puntaje de angustia personal lo cual sugiere que la
variación genética de DRD4 modera la relación entre la baja actividad de
MAO-A y la hipersensibilidad ante situaciones emocionalmente negativas,
esto es, la baja actividad de MAO-A confiere hiperreactividad ante
situaciones estresantes la cual se incrementa si un sujeto es portador
de al menos un alelo de 7 repeticiones de DRD4.
Nuestros
resultados sugieren que ambos genes producen un fenotipo caracterizado
por el enojo, la hostilidad y la impulsividad que podrían conferir
riesgo para el desarrollo de conductas violentas impulsivas (Hare &
Neumman, 2008; Kennealy et al., 2010; Lovett & Sheffield, 2007;
Oquendo et al., 2001; Romero & Ostrosky, 2010; Suter et al., 2002;
Yang et al., 2010;). Es importante señalar que estos alelos de riesgo,
considerando nuestros resultados, no necesariamente se relacionan con
episodios violentos, en futuras investigaciones es necesaria la medición
de estos episodios para poder establecer una relación entre el
incremento en el enojo, hostilidad e impulsividad y la comisión de
conductas violentas.
Estos
resultados son interesantes, ya que, abren la posibilidad de investigar
endofenotipos que sean más cercanos a los efectos fisiológicos de la
variación genética, tales como el desempeño neuropsicológico o el
volumen y activación cerebrales, y de esta manera explorar si existe
relación entre las mediciones conductuales medidas mediante escalas y
los endofenotipos. Consideramos que la investigación de endofenotipos
permitiría aclarar el efecto diferencial de ambos genes, esto es, ambos
genes tuvieron efecto sobre distintos componentes de los constructos y
esto tal vez se deba a la expresión que cada gen tiene sobre el volumen o
la función cerebrales.
Un
aspecto importante de esta investigación es el estudio de las
interacciones entre genes, ya que, se ha propuesto que la función de un
gen puede modificar la actividad fenotípica de otro gen, en futuras
investigaciones, sería interesante estudiar si existe epistasis entre
estos genes y otros que se han asociado a la conducta violenta, así como
con otros que aunque no se asocien con violencia tengan algún efecto
sobre la actividad de MAO-A y dopamina.
En
conclusión podemos sugerir que variaciones genéticas de MAO-A y DRD4
tiene un efecto sobre mediciones relacionadas a la conducta violenta,
expresadas como un efecto principal y como la interacción entre los
alelos de riesgo que incrementan la reactividad ante situaciones
estresantes lo cual se considera un factor de riesgo para el desarrollo
de conductas violentas.
Referencias
Andreu,
J., Peña, E. y Ramírez, J. (2009). Cuestionario de agresión reactiva y
proactiva: un instrumento de medida de la agresión en adolescentes. Revista de Psicopatología y Psicología Clínica, 14, 1, 37-49.
Avale,
M., Falzone, T., Gelman, D., Low, M., Grandy, D. & Rubinstein, M.
(2004). The dopamine D4 receptoris essential for hyperactivity and
impaired behavioral inhibition in a mouse model of attention
deficit/hyperactivity disorder. Molecular Psychiatry, 1, 718-726. [ Links ]
Beaver,
K., DeLisi, M., Vaughn, M. & Barnes, J. (2010). Monoamine oxidase A
genotype is associated with gang membership and weapon use. Comprehensive Psychiatry, 51, 130-134. [ Links ]
Brunner,
H., Nelen, M., Breakefield, X., Ropers, H. & van Oost, B. (1993).
Abnormal behavior associated with a point mutation in the structural
gene for monoamine oxidase A. Science, 262, 5133, 578-580. [ Links ]
Buss, A. & Durkee, A. (1957). An inventory for assessing different kin, DS of hostility. Journal of Consulting and Clinical Psychology, 21, 343-349. [ Links ]
Cases,
O., Seif, I., Grimsby, J., Gaspar, P., Chen, K., Pournin, S., ... De
Maeyer, E. (1995). Aggressive behavior and altered amounts of brain
serotonin and norepinephrine in mice lacking MAOA. Science, 268, 5218, 1763-1766. [ Links ]
Caspi,
A., McClay, J., Moffitt, T., Mill, J., Martin, J., Craig, I., ...
Poulton, R. (2002). Role of genotype in the cycle of violence in
maltreated children. Science, 297, 5582, 851-854. [ Links ]
Davis, M. H. (1980). A multidimensional approach to individual differences in empathy. Catalog of Selected Documents in Psychology, 10, (85), 1-17. [ Links ]
Dmitrieva,
J., Chen, C., Greenberger, E., Ogunseitan, O. & Ding, Y. (2010).
Gender-specific expression of the DRD4 gene on adolescent delinquency,
anger and thrill seeking. Social Cognitive and Affective Neuroscience, 6, (1), 82-89. [ Links ]
Durston,
S., Fossella, J., Casey, B., Hulshoff, H., Galvan, A., Schnack, H., ...
van Engeland H. (2005). Differential effects of DRD4 and DAT1 genotype
on fronto-striatal gray matter volumes in a sample of subjects with
attention deficit hyperactivity disorder, their unaffected siblings, and
controls. Molecular Psychiatry, 10, 678-685. [ Links ]
Eisenberger,
N., Way, B., Taylor, S., Welch, W. & Lieberman, M. (2007).
Understanding genetic risk for aggression: Clues from the brain's
response to social exclusion. Biological Psychiatry, 61, 1100-1108.
Forbes,
E., Brown, S., Kimak, M., Ferrell, R., Manuck, S. & Hariri, A.
(2009). Genetic variation in components of dopamine neurotransmission
impacts ventral striatal reactivity associated with impulsivity. Molecular Psychiatry, 14 (1), 60-70. [ Links ]
Frazzetto,
G., Di Lorenzo, G., Carola, V., Proietti, L., Sokolowska, E.,
Siracusano, A., . Troisi, A. (2007). Early trauma and increased risk for
physical aggression during adulthood: the moderating role of MAOA
genotype. PLoSONE, 2 (5). 1-6. [ Links ]
Fresán,
A., Camarena, B., Apiquian, R., Aguilar, A., Urraca, N. & Nicolini,
H. (2007). Association study of MAOA and DRD4 genes in schizophrenic
patients with aggressive behavior. Neuropsychobiology, 55, 171-175. [ Links ]
Hare, R. & Neumman, C. (2008). Psychopathy as a clinical and empirical construct. Annual Review of Clinical Psychology, 4, 217-246. [ Links ]
Huizinga,
D., Haberstick, B., Smolen, A., Menard, S., Young, S., Corley, R., ...
Hewitt, J. (2006). Childhood maltreatment, subsequent antisocial
behavior, and the role of monoamine oxidase A genotype. Biological Psychiatry, 60, 677-683. [ Links ]
Kennealy,
P., Skeem, J. & Walters, G. (2010). Do core interpersonal and
affective traits of PCL-R psychopathy interact with antisocial behavior
and disinhibition to predict violence?. Psychological Assessment, 22 (3), 569-580. [ Links ]
Kim-Cohen,
J., Caspi, A., Taylor, A., Williams, B., Newcombe, R., Craig, I. &
Moffitt, T. (2006). MAOA, maltreatment, and gene-environment interaction
predicting children's mental health: new evidence and a meta-analysis. Molecular Psychiatry, 11, 903-913. [ Links ]
Langley,
K., Marshall, L., van den Bree, M., Thomas, H., Owen, M., O'Donovan, M.
& Thapar, A. (2004). Association of the dopamine D4 receptor gene
7-repeat allele with neuropsychological test performance of children
with ADHD. American Journal of Psychiatry, 161, (1), 133-138. [ Links ]
Levenson, M., Kiehl, K. & Fitzpatrick, C. (1995). Assessing psychopathic attributes in a noninstitutionalized population. Journal of Personality and Social Psychology, 68, (1), 151-158. [ Links ]
Lovett, B. & Sheffield, R. (2007). Affective empathy deficits in aggressive children and adolescents: a critical review. Clinical Psychology Review, 27, 1 -13. [ Links ]
Lusher, J., Chandler, C. & Ball, D. (2004). Alcohol dependence and the alcohol Stroop paradigm: Evidence and issues. Drug and Alcohol Dependence, 75, (3), 225-231. [ Links ]
Meyer-Lindenberg,
A., Buckholtz, J., Kolachana, B., Hariri, A., Pezawas, L., Blasi, G.,
... Weinberger, D. (2006). Neural mechanisms of genetic risk for
impulsivity and violence in humans. PNAS, 103 (16), 6269-6274. [ Links ]
Nouvion,
S., Cherek, D., Lane, S., Tcheremissine, O. & Lieving, L. (2007).
Human proactive aggression: association with personality disorders and
psychopathy. Aggressive Behavior, 33, 552-562. [ Links ]
Novaco, R. (1994). Anger as a risk factor for violence among the mentally disordered. En J. Monohan & H. Steadman (Eds.), Violence and mental disorder (pp. 21-59). Chicago: University of Chicago Press. [ Links ]
Oquendo,
M., Graver, R., Baca-García, E., Morales, M., Montalván V. & Mann,
J. (2001). Spanish adaptation of the Buss-Durkee Hostility Inventory
(BDHI). The European Journal of Psychiatry, 15 (2), 101 -112. [ Links ]
Páez,
F., Jiménez, A., López, A., Ariza, R., Paulo, J., Ortega, H. &
Nicolini, H. (1996). Estudio de validez de la traducción al castellano
de la Escala de Impulsividad de Plutchik. Salud Mental, 19 (3), 10-12. [ Links ]
Pérez,
A., de Paúl, J., Etxeberría, J., Montes, M. y Torres, E. (2003).
Adaptación de Interpersonal Reactivity Index (IRI) al español. Psicothema, 15 (2), 267-272. [ Links ]
Plutchik, R & Van Pragg, H. (1989). The measurement of suicidality, aggressivity and impulsivity. Progress in Neuro-Psychopharmacology and Biological Psychiatry, 13, 23-34. [ Links ]
Raine,
A., Dodge, K., Loeber, R., Gatzke-Kopp, L., Lynam. D., Reynolds, C., .
Liu, J. (2006). The reactive.proactive aggression questionnaire:
differential correlates of reactive and proactive aggression in
adolescent boys. Aggressive Behavior, 32, 159-171. [ Links ]
Rhee,
S. H. & Waldman, I. D. (2002). Genetic and environmental influences
on antisocial behaviour: Meta-analysis of twin and adoption studies. Psychology Bulletin, 128, 633-645. [ Links ]
Romero,
C. y Ostrosky, F. (2010). Efecto de las cogniciones implícitas y la
psicopatía sobre la comisión de crímenes violentos. Manuscrito no
publicado. Laboratorio de Neuropsicología y Psicofisiología, Universidad
Nacional Autónoma de México, Distrito Federal, México. [ Links ]
Sabol, S., Hu, S. & Hamer, D. (1998). A functional polymorphism in the monoamine oxidase A gene promoter. Human Genetics, 103 (3), 273-279. [ Links ]
Spinella, M. (2005). Prefrontal substrates of empathy: psychometric evidence in a community sample. Biological Psychology, 70, 175-181. [ Links ]
Suter, J., Byrne, M., Byrne, S., Howells, K. & Day, A. (2002). Anger in prisoners; women are different from men. Personality and Individual Dfferences, 32, 1087-1100. [ Links ]
Vieyra,
G., Moraga, M., Henríquez, H., Aboitiz, F. & Rothhammer, F. (2003).
Distribution of DRD4 and DAT1 alleles from dopaminergic system in a
mixed Chilean population. Revista Médica de Chile, 131 , 135-143. [ Links ]
Yang,
M., Wong, S. & Coid, J. (2010). The efficacy of violence
prediction: a metaanalytic comparison of nine risk assessment tools. Psychological Bulletin,136 (5), 740-767. [ Links ]


